Un guide de référence pour la préparation des solutions
Charge nette, point isoélectrique et pH des peptides.
La charge nette d’un peptide varie avec le pH, et c’est le premier indice de son comportement en solution. Avant de reconstituer un peptide pour préparer une solution mère destinée à un essai, comptez ses charges. Ce guide fait le comptage sur une séquence publiée, explique le point isoélectrique et pourquoi les calculateurs ne s’entendent pas sur sa valeur, puis traite de la mesure et de l’ajustement du pH en petit volume et de ce qui arrive aux tampons à la congélation.
Pour la recherche en laboratoire seulement. Non destiné à un usage humain ou vétérinaire.
Dans ce guide
Comment compter la charge nette d’un peptide?
Les fournisseurs comptent les charges avec une règle simple : chaque groupe acide ou basique vaut −1 ou +1, l’histidine dépend du pH, et la somme donne la charge nette.
La règle des fournisseurs attribue à chaque groupe la valeur suivante :
- Groupes basiques : +1 pour chaque lysine (K) et arginine (R), et +1 pour une amine N-terminale libre.
- Groupes acides : −1 pour chaque acide aspartique (D) et acide glutamique (E), et −1 pour un carboxyle C-terminal libre.
- Histidine (H) : +1 sous environ pH 6, et 0 au-dessus.
Les extrémités comptent. Une amine N-terminale libre et un carboxyle C-terminal libre sont des groupes chargés au même titre qu’une chaîne latérale, et les guides des fournisseurs demandent de tenir compte des deux extrémités. Une extrémité bloquée retire sa charge du comptage : lisez donc les groupes terminaux sur le certificat avant de commencer.
Ce comptage importe parce qu’en règle générale, plus un peptide porte de résidus chargés, plus il est soluble en solution aqueuse. C’est pourquoi il précède le choix d’un premier solvant.
Le comptage est une estimation rapide, pas une mesure. Il donne un nombre entier à un seul pH, traite chaque groupe comme indépendant de ses voisins et ne considère que les extrémités libres et les 20 acides aminés standard et leurs formes D. Une histidine vers pH 6, ou une extrémité près de son pKa, n’est que partiellement chargée.
Exemple chiffré : la charge nette du BPC-157 à pH 7
Le BPC-157 est la séquence de 15 résidus GEPPPGKPADDAGLV. La masse moléculaire indiquée dans la bibliothèque des composés GPC, 1 419,56 g/mol, correspond à la chaîne non modifiée : cet exemple suppose donc une amine N-terminale libre et un acide C-terminal libre.
Le certificat du lot fait foi. Si un certificat indique d’autres groupes terminaux, le comptage ci-dessous change avec eux.
L’extrémité N-terminale et une lysine donnent +2; un acide glutamique, deux acides aspartiques et l’extrémité C-terminale donnent −4. La séquence ne contient ni histidine, ni arginine, ni cystéine, ni tyrosine : ces six groupes forment tout le comptage.
Calculée avec 16 jeux de valeurs de pKa publiés plutôt qu’avec la règle des nombres entiers, la charge nette à pH 7 va de −2,00 à −2,35 : le comptage simple et le calcul complet concordent.
Les extrémités bloquées changent le compte. Une amidation C-terminale retire le −1 et laisse une charge nette de −1 à pH 7; une acétylation N-terminale retire le +1 et laisse −3.
- Amine N-terminale
- +1
- Lysine, position 7
- +1
- Acide glutamique, position 2
- −1
- Acide aspartique, positions 10 et 11
- −1 chacun, −2 au total
- Carboxyle C-terminal
- −1
- Charge nette à pH 7
- −2, pour six groupes ionisables sur 15 résidus
Qu’est-ce que le point isoélectrique d’un peptide?
Le point isoélectrique, ou pI, est le pH auquel la charge nette d’un peptide est nulle.
Sous le pI, la charge nette est positive; au-dessus, elle est négative. Un comptage à un seul pH donne un point; en répétant le calcul sur toute l’échelle de pH, on obtient une courbe charge–pH, et le pI se trouve là où cette courbe croise zéro.
Pour le BPC-157 à extrémités libres, la courbe calculée va de +2 à pH bas, où l’extrémité N-terminale et la lysine sont chargées et les quatre carboxyles neutres, à −4 à pH élevé, où les quatre carboxyles sont chargés et les deux amines neutres.
Entre ces plateaux, avec les valeurs de pKa d’EMBOSS, la charge vaut environ +1,5 à pH 3, passe par zéro à pH 3,88, atteint environ −1,7 à pH 5 et reste près de −2 d’environ pH 6 à 7,5, avant que l’amine N-terminale commence à perdre sa charge.
Les 16 jeux de pKa publiés situent le pI du BPC-157 entre 3,61 et 4,15. La courbe est un calcul, non une mesure, et ce n’est pas une courbe de solubilité : elle montre combien de charges la molécule porte à chaque pH, et ne dit rien de la quantité qui se dissoudra.
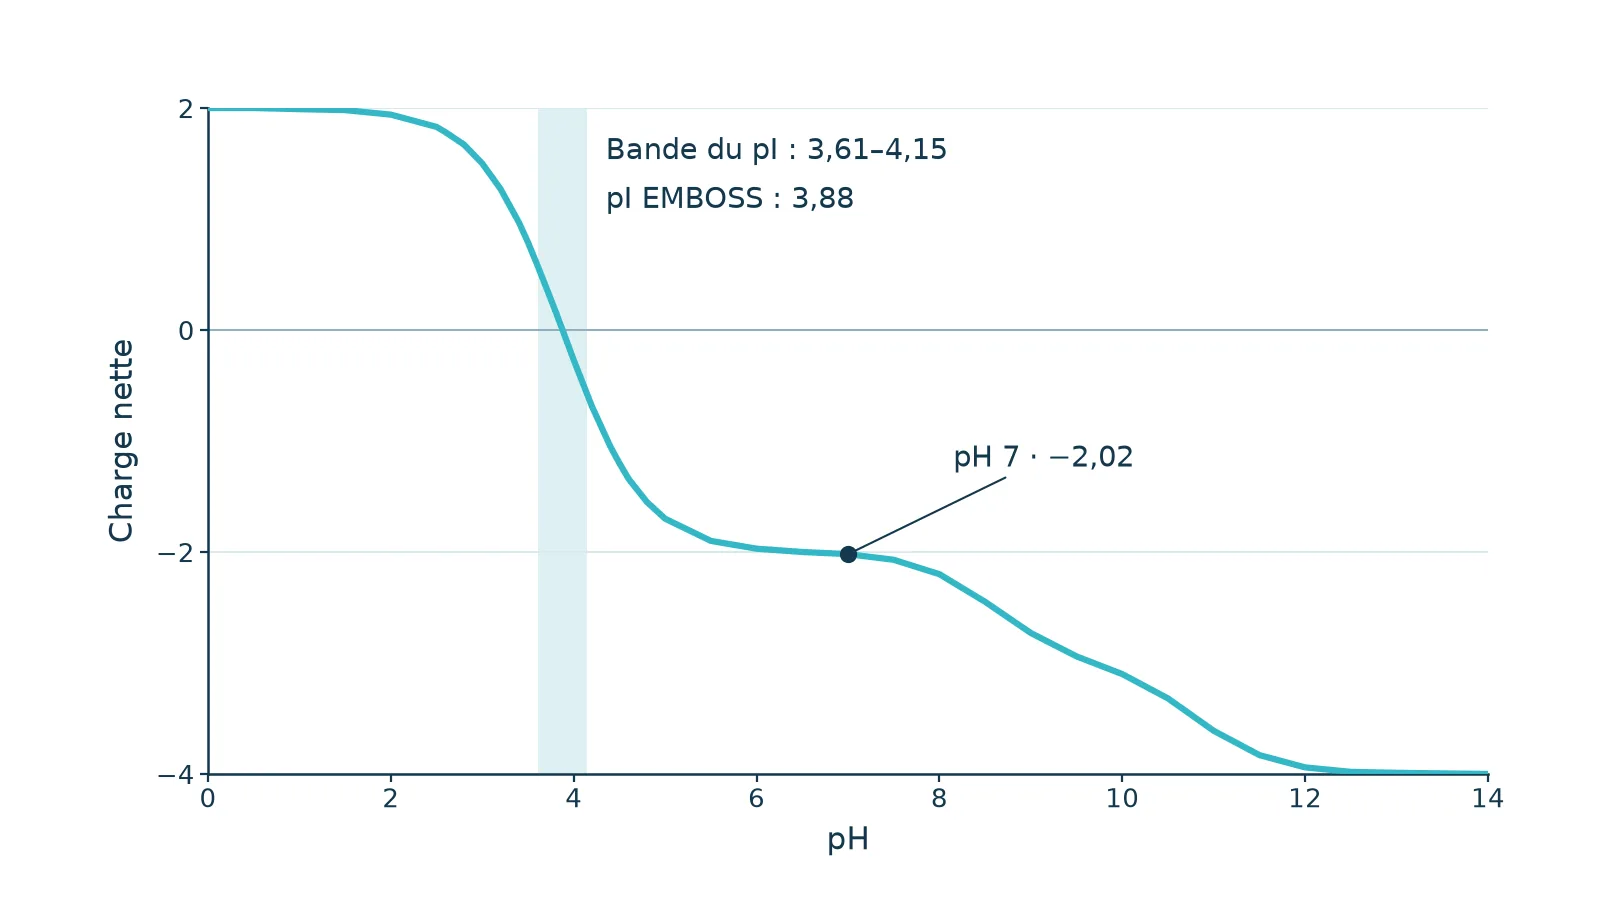
- EMBOSS : 3,88; bande des jeux publiés : 3,61–4,15.
- Charge nette : −2,02.
Données de charge calculée
| pH | Charge nette · EMBOSS |
|---|---|
| 0,0 | +2,00 |
| 1,0 | +1,99 |
| 2,0 | +1,94 |
| 2,5 | +1,83 |
| 3,0 | +1,50 |
| 3,5 | +0,79 |
| 3,6 | +0,59 |
| 3,7 | +0,38 |
| 3,8 | +0,17 |
| 3,9 | −0,05 |
| 4,0 | −0,27 |
| 4,2 | −0,69 |
| 4,5 | −1,20 |
| 5,0 | −1,70 |
| 6,0 | −1,97 |
| 7,0 | −2,02 |
| 8,0 | −2,20 |
| 9,0 | −2,73 |
| 10,0 | −3,10 |
| 11,0 | −3,61 |
| 12,0 | −3,94 |
| 13,0 | −3,99 |
| 14,0 | −4,00 |
Pourquoi la solubilité est-elle souvent la plus faible près du pI?
Sans charge nette, les molécules se repoussent le moins et tendent à s’agréger : le pI est donc souvent, mais pas toujours, le point de plus faible solubilité.
La charge nette joue aussi sur l’agrégation : en règle générale, plus elle est faible, plus la tendance à s’agréger est forte. Près du pI, on a observé des agrégats amorphes plutôt que des fibrilles.
Dans une étude classique sur une protéine, le pH de solubilité minimale suivait le pI, se situait à moins de 1 unité de pH de celui-ci, et la solubilité augmentait nettement de part et d’autre. Pour l’une des protéines, la solubilité était de 2,2 mg/mL à pH 3,6, près de son pI de 3,5, et de 23,3 mg/mL à pH 5,4 : environ dix fois plus, à 1,9 unité de pH de distance.
L’orientation pratique en découle : éloignez le pH du pI. Pour un peptide acide, dont le pI est inférieur à 7, montez le pH; pour un peptide basique, dont le pI est supérieur à 7, abaissez-le.
La distance nécessaire n’a pas de valeur fixe. Un peptide publié de 40 résidus, de pI 5,2, ne se dissolvait pas à pH 7, soit 1,8 unité de pH au-dessus de son pI, mais se dissolvait à pH 9. Retenez la direction comme règle, et trouvez la distance de travail par un essai de solubilité sur une petite portion, dans la plage de pH que tolère votre méthode.
Ces valeurs décrivent une protéine et un peptide tirés de la littérature. Elles illustrent la tendance; ce ne sont pas des valeurs pour une autre séquence.
Pourquoi les valeurs de pI prédites divergent-elles?
Un pI calculé est une estimation fondée sur des hypothèses. Chaque outil fait les siennes, si bien qu’une même séquence peut donner plusieurs réponses.
Chaque groupe est traité isolément
Les calculateurs supposent que chaque groupe s’ionise seul, sans interaction électrostatique avec ses voisins. Le comptage en nombres entiers repose aussi sur elle.
Chaque outil a ses propres valeurs
Les valeurs de pKa de chaque calculateur ont été établies de façon empirique, à des températures et des forces ioniques différentes; le jeu de Bjellqvist qu’utilise ExPASy provient de la migration en gel dans l’urée à 9,2 M et à 9,8 M. D’un jeu publié à l’autre, le pKa N-terminal va à lui seul de 7,26 à 9,69.
Un peptide court dépend surtout de ses extrémités
Dans une chaîne courte, les deux extrémités portent une grande part de la charge totale. Une comparaison publiée de calculateurs de pI a montré que, sur des peptides, l’essentiel des écarts entre méthodes venait des groupes terminaux.
De 3,61 à 4,15 selon 16 jeux publiés
Calculé avec 16 jeux de pKa publiés, le pI du BPC-157 à extrémités libres va de 3,61 à 4,15, avec une médiane de 3,84. ExPASy donne 4,03 et EMBOSS 3,88.
Citez une plage, pas une décimale
Dans une comparaison publiée sur des peptides de pI mesuré, l’erreur typique était d’environ 0,25 unité de pH pour le meilleur jeu et de 0,669 pour celui de Bjellqvist. ExPASy prévient aussi que les petites molécules à faible pouvoir tampon sont prédites de façon moins fiable.
Prédire la solubilité est plus approximatif encore
Un calculateur de peptides qualifie lui-même de très approximative son estimation de la solubilité dans l’eau et précise que la solubilité doit être déterminée par l’expérience. Les fournisseurs font un essai sur une petite portion avant de dissoudre tout un échantillon, et au moins l’un d’eux publie des données de solubilité propres à chaque lot.
Comment mesurer le pH dans 50 à 200 µL?
Une petite solution mère laisse peu de marge : la méthode doit s’adapter au volume. Une microélectrode donne une lecture; le papier indicateur répond à une question plus grossière.
- 01
Choisir une électrode faite pour le volume
Les microélectrodes de pH à pointe de 3 mm sont prévues pour environ 100 µL, et des microsondes spécialisées descendent jusqu’à 15 µL. Des modèles étroits entrent dans les tubes de microcentrifugeuse et les tubes RMN, et des électrodes à membrane plate lisent un échantillon trop petit pour couvrir une pointe ordinaire.
- 02
Immerger la jonction de référence
L’électrode ne lit correctement que si sa jonction de référence est entièrement immergée : vérifiez la profondeur qu’elle exige avant de décider de la taille de la portion à mesurer.
- 03
Mesurer une portion à part
L’électrolyte de référence s’écoule de l’électrode dans tout ce qu’elle touche. Mesurez une portion réservée à cette fin, et ne la remettez pas dans la solution mère ensuite.
- 04
Mélanger, puis lire
Mélangez la portion avant la lecture pour qu’elle soit homogène. Dans un tube de microcentrifugeuse, quelques aspirations-refoulements doux à la pipette suffisent.
- 05
Nettoyer l’électrode après usage
Les peptides et les protéines peuvent précipiter dans une jonction de référence en céramique et la colmater. Des modèles à jonction ouverte existent pour cette raison, et le guide d’un fabricant nettoie une jonction colmatée pendant plusieurs heures dans de la pepsine à 5 % dans l’acide chlorhydrique à 0,1 mol/L.
- 06
Pour un contrôle grossier, déposer une goutte sur papier indicateur
Le papier indicateur ne distingue que des écarts de 0,2 à 1 unité de pH : assez pour une question grossière comme « la solution est-elle sous pH 4? », et c’est ainsi que des méthodes de fabricants l’emploient pour des échantillons de peptides. Avec un embout de pipette propre, touchez la zone indicatrice avec une petite goutte, environ un microlitre, puis jetez cette portion. Ne trempez jamais une bandelette dans la solution mère : les papiers ordinaires peuvent libérer du colorant, et dans une solution de peptide faiblement tamponnée, l’indicateur lui-même peut déplacer le pH.
Comment ajuster le pH d’un petit volume sans dépasser la cible?
Les guides des fournisseurs demandent de vérifier et de corriger le pH après un premier solvant acide ou basique. Dans 100 µL, la difficulté n’est pas de déplacer le pH, mais de s’arrêter là où on le voulait.
- 01
Mesurer avant d’ajuster
Le contre-ion et tout acide résiduel fixent le pH de départ autant que la séquence. Les peptides purifiés par HPLC arrivent habituellement sous forme de sels de trifluoroacétate (TFA), et l’acide trifluoroacétique est un acide beaucoup plus fort que l’acide acétique, avec un pKa de 0,52 contre 4,76. Lisez d’abord le pH et ajustez à partir de la valeur trouvée.
- 02
Prévoir un pouvoir tampon presque nul près de la neutralité
Un peptide dissous dans l’eau est faiblement tamponné. Prenons la séquence de l’exemple chiffré comme modèle : à 1 mg/mL, sa solution serait à 0,704 mM et, faute d’histidine, le seul groupe qui peut capter de l’acide ou de la base entre environ pH 5 et 8 est l’amine N-terminale. Son pouvoir tampon calculé entre pH 6 et 7 est de 0,03 à 0,06 mM par unité de pH, contre 1,8 mM à pH 4.
- 03
Employer un acide ou une base dilués
Dans un calcul modèle portant sur 100 µL de cette solution à pH 6,0, où le peptide est le seul tampon, 1 µL de base forte à 1 M porte le pH à environ 11,9. Le même microlitre à 100 mM atteint environ 10,2, à 10 mM environ 7,7 et à 1 mM environ 6,2; 1 µL d’acide fort à 1 M donne environ pH 2,1.
- 04
Procéder par petits ajouts et relire
Ajoutez l’acide ou la base par ajouts de 1 µL ou moins, mélangez doucement et relisez le pH avant l’ajout suivant. Ajustez le pH par petits ajouts jusqu’à la valeur qu’exige votre méthode.
- 05
Monter le pH en douceur
Un fournisseur de peptides recommande de n’utiliser que des bases très faibles pour monter le pH, afin d’éviter la racémisation. Les séquences qui portent une cystéine libre ajoutent un second coût : les groupes thiol s’oxydent rapidement en disulfures au-dessus de pH 7.
- 06
Consigner chaque ajout
Chaque ajout dilue la solution mère : 5 µL ajoutés à 100 µL abaissent la concentration de 4,8 %. Notez l’acide ou la base, sa concentration, le volume total ajouté et la lecture finale, et corrigez la concentration de la solution mère en fonction du volume ajouté.
Calcul modèle : le pouvoir tampon et les valeurs de pH de cette section supposent un comportement idéal, emploient les valeurs de pKa d’EMBOSS et traitent le peptide comme le seul tampon. Ils montrent l’ordre de grandeur du problème, pas des lectures à attendre. Un contre-ion comme l’acétate, de pKa 4,76, ajouterait un pouvoir tampon entre environ pH 4 et 5,5.
Qu’arrive-t-il au pH d’un tampon quand la solution gèle?
Un tampon qui tient son pH à température ambiante peut dériver fortement en gelant. Pour une solution mère qui sera congelée, le choix du tampon compte autant que le pH fixé.
Le pH chute quand le phosphate disodique cristallise
À mesure que la glace se forme, le phosphate disodique cristallise et le pH chute brusquement. Au départ de pH 7,4, le tampon phosphate de sodium à 50 et 100 mM a atteint pH 4,2 à −10 °C, et à 8 mM, pH 5,2. Au départ de pH 5,7, la baisse était moindre : 5,1 et 4,7 pour 8 et 100 mM.
Un écart d’environ 4 unités de pH
Sans autre soluté, le pH du PBS s’est déplacé d’environ 4 unités de pH à la congélation, pour la même raison. Le tréhalose a empêché la cristallisation du sel tampon, et le mannitol l’a réduite en partie, ce qui a atténué l’écart.
Des écarts plus faibles, surtout à la hausse
Entre +25 et −30 °C, le pH des tampons histidine, acétate, citrate et succinate a augmenté de moins de 1 unité de pH, tandis que celui du Tris a augmenté d’environ 1,2 unité de pH. Le phosphate de potassium s’emploie à la place du phosphate de sodium pour limiter la chute à la congélation.
Un risque à maîtriser, pas une perte certaine
Ces écarts viennent de la variation des pKa avec la température, des limites de solubilité, de la cristallisation eutectique et de la cryoconcentration. Un écart est un risque, non une preuve de dommage : dans une étude sur une solution d’anticorps, l’agrégation dépendait de la présence d’un cryoprotecteur non cristallisant, et non du changement de pH.
Sources : Gómez, Pikal et Rodríguez-Hornedo (2001) pour le phosphate de sodium; Thorat et Suryanarayanan (2019) pour le PBS; Kolhe, Amend et Singh (2010) pour les autres tampons.
Questions fréquentes sur la charge et le pH des peptides.
Quelle est la charge nette d’un peptide à pH 7?
Comptez +1 pour chaque lysine, arginine et amine N-terminale libre, et −1 pour chaque acide aspartique, acide glutamique et carboxyle C-terminal libre; l’histidine ne compte +1 que sous environ pH 6. Pour le BPC-157 à extrémités libres, la somme est de −2. Les extrémités bloquées changent le compte : vérifiez d’abord les groupes terminaux sur le certificat.
Qu’est-ce que le pI, et pourquoi la solubilité y est-elle souvent la plus faible?
Le pI est le pH auquel la charge nette est nulle. Sans charge nette, les molécules se repoussent le moins : le pI est donc souvent le point de plus faible solubilité. Dans une étude classique sur une protéine, le minimum se situait à moins de 1 unité de pH du pI.
À quelle distance du pI faut-il travailler?
Éloignez-vous du pI : montez le pH pour une séquence acide et abaissez-le pour une séquence basique. Aucune distance fixe n’est fiable; trouvez-la par un essai de solubilité sur une petite portion, dans la plage de pH que tolère votre méthode.
Pourquoi les calculateurs de pI ne donnent-ils pas la même valeur?
Chaque outil suppose que chaque groupe s’ionise indépendamment et emploie sa propre table de pKa, mesurée dans ses propres conditions. Pour les peptides courts, les extrémités causent l’essentiel de l’écart. Citez une plage plutôt qu’une seule décimale.
Le papier pH suffit-il pour une solution de peptide?
Pour une question grossière, par exemple savoir si une solution est sous pH 4, oui. Le papier ne distingue que des écarts de 0,2 à 1 unité de pH, et dans une solution faiblement tamponnée, l’indicateur lui-même peut fausser la lecture. Déposez une petite goutte avec un embout de pipette propre, et ne trempez jamais une bandelette dans la solution mère.
Quel tampon choisir pour une solution mère qui sera congelée?
Évitez si possible le phosphate de sodium et le PBS : à la congélation, le phosphate disodique cristallise et le pH peut passer de 7,4 à environ 4,2. Les tampons histidine, acétate, citrate et succinate se déplacent de moins de 1 unité de pH, et le phosphate de potassium évite la forte chute.